NIGAMI LAB 図鑑 苦味ペプチド English
化合物群
苦味ペプチド bitter peptides
苦味ペプチドは、発酵・チーズ熟成・酵素加水分解の過程で食品タンパク質(カゼイン、大豆タンパク質等)のタンパク質分解により遊離する疎水性オリゴペプチド。多くは苦味を呈する。
説明を読む ↓ あとで読むに保存
化合物群 / compound-class-bitter-peptides
このページの内容(9 節) 説明 この説明の根拠(7) 主題ハブ 関連をたどる 関連項目(10) 組成・含有(4) 感覚(5) 機構・受容体(5) 加工・調理でどう変わる(3) このページの内容
説明 この説明の根拠(7) 主題ハブ 関連をたどる 関連項目(10) 組成・含有(4) 感覚(5) 機構・受容体(5) 加工・調理でどう変わる(3) ↑ 上へ戻る
↑ 苦味を読む
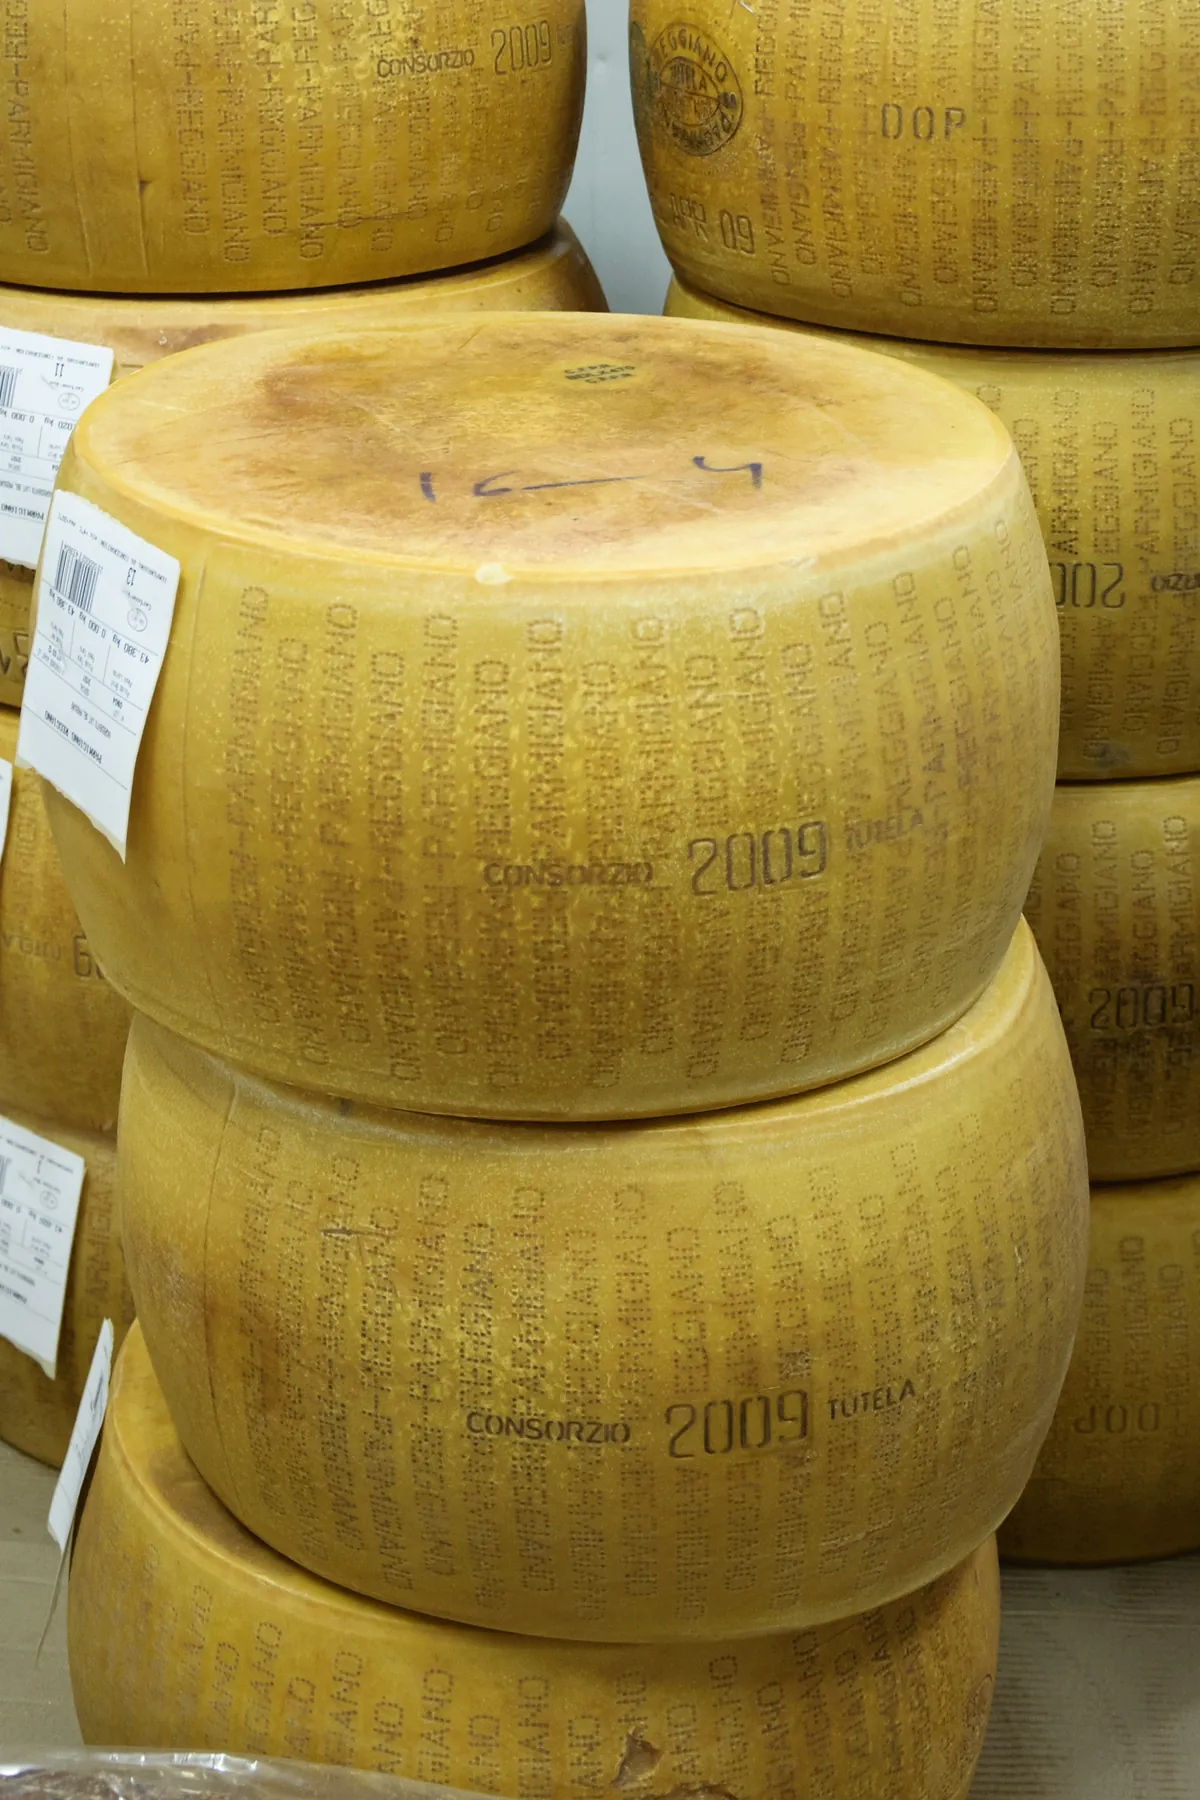
苦味 ペプチドは、チーズの熟成や酵素によるタンパク質分解の過程で、カゼインや大豆タンパク質などの食品タンパク質が切り刻まれてできる、疎水性(水になじみにくい性質)のアミノ酸を多く含む小さなペプチド(アミノ酸が数個つながった断片)である。熟成したゴーダチーズの水溶性の部分からは16種の苦味ペプチドが、熟成した辛口チェダーチーズからは苦味の強い5種のペプチドが、それぞれカゼインの分解物として同定されている。タンパク質を酵素で分解する加工では、こうした低分子量の疎水性ペプチドの生成が苦味の主因になりやすいと総説はまとめている。
ただし、個々のペプチド濃度と苦味の強さの関係は単純ではない。減脂肪チェダーチーズを使った研究では、一種類のペプチドの濃度と訓練された審査員の苦味評点との相関は弱く、2種のペプチドを組み合わせた指標でようやく強い相関が得られた。大豆タンパク質の加水分解物でも、苦味は分子量に対して山型の変化を示し、分子量が一定以下に下がるとかえって苦味は弱まっており、「低分子量ペプチドほど苦い」という総括をそのまま当てはめられない例になっている。熟成チェダーの苦味を、複数のβ-カゼイン由来ペプチドを添加して若いチーズで再現した実験では、本物の熟成チーズと苦味強度に有意差のない味が作られており、そのうち一種のペプチドが熟成中に大きく増えていた。
苦味を感じる仕組みの入り口として、培養細胞を使った実験では苦味を持つジペプチドやトリペプチドが受容体TAS2R1を活性化させ、味のないジペプチドは高い濃度でも反応を起こさなかった。カゼインをトリプシンで分解した苦味画分 を使った実験でも、複数のTAS2R 受容体、特にTAS2R1とTAS2R4が反応した。ただしこの画分は構造の異なる多数のペプチドの混合物であり、どのペプチドがどの受容体に対応するのかまでは、この実験だけでは特定できないと著者ら自身が注記している。
主題ハブ — この項目が属するテーマをまとめて読む
苦味受容体 → 受容体の分担と個人差は、感じる苦味をどこまで説明するか
発酵と苦味ペプチド → 発酵はどこで苦味を作り、どこで壊すか
主題ハブは、図鑑の主張データを一つの問いで束ねた読み物です。項目からハブへ、ハブから隣の項目へ渡れます。
関連をたどる
チーズ →苦味の一部の由来→ 苦味ペプチド
苦味ペプチド →の苦味を再構成する→ チーズ →特徴づける感覚テーマ→ 苦味
苦味ペプチド →活性化する→ TAS2R1
構造化された主張 — 節を開くと、主張ごとの確度・根拠・限界が読めます
組成・含有(4) 苦味ペプチド にはキモシン由来のメンバーが含まれる: β-CN f193-209: チーズの苦味と関連づけられてきたキモシン由来ペプチド。lactocepinでは加水分解されず、スターター間で濃度差なし(0.3-0.9 mg/g, P>0.5)。αs1-CN f1-9 との併用で苦味化傾向の予測指標(r=0.84)が提案されている 支持あり
範囲: 低脂肪チェダーチーズ(Broadbent 2002)。苦味との関連は同論文が先行文献から引用
注記: 苦味との関連づけ自体は Broadbent 2002 が先行文献(同論文 refs 4・28)を引用する形で、本論文内での閾値測定はない。
"Because αS1-CN (f 1-9) and the chymosin-derived peptide β-CN (f 193-209) have been associated with bitterness in cheese"(先行文献を引用)。β-CN f193-209 はキモシン由来で lactocepin では加水分解されず、濃度はスターター間で有意差なし(0.3-0.9 mg/g, ANOVA P>0.5)。両ペプチド併用の指標が苦味化傾向の予測に有用と提案(r=0.84)。
限界: β-CN f193-209 の苦味自体の閾値測定は本論文にはなく、関連づけは引用文献(refs 4・28)に依存。
熟成 Cheddar 中の MALDI-TOF で測定した β-CN f193-209 濃度は官能苦味強度と相関し(180日で r = 0.803、270日で 0.554)、このペプチドをチーズ苦味に連結した定量可能なマーカーとして使うことを支持する。
限界: 相関は熟成が長いほど弱まる(270日で 0.554)ため、このペプチドは唯一の駆動因子ではなく部分的なマーカー。抄録レベルの抽出。
データを表示 compound-class-bitter-peptides —includes_chymosin_derived_member→ "β-CN f193-209: チーズの苦味と関連づけられてきたキモシン由来ペプチド。lactocepinでは加水分解されず、スターター間で濃度差なし(0.3-0.9 mg/g, P>0.5)。αs1-CN f1-9 との併用で苦味化傾向の予測指標(r=0.84)が提案されている"claim: clm-bcn-f193-209-chymosin-marker / type: composition / 更新: 2026-08-30
範囲: 市販しょうゆ(今村・片山2017の官能評価用語の妥当性検討における背景記述)
注記: 今村・片山(2017)は官能評価の定量指標を選ぶ過程で「しょうゆの苦味は,isoleucineなどの苦味を呈するアミノ酸やペプチド類に起因すると考えられている」と述べ、苦味の定量分析指標として苦味アミノ酸であるフェニルアラニンを用いている。この記述は同論文が引用する先行文献(文献23、原著未確認の孫引き)に基づく背景説明であり、同論文自身が新たに苦味ペプチドを単離・同定したものではない。
逐語: 「しょうゆの苦味は,isoleucineなどの苦味を呈するアミノ酸やペプチド類に起因すると考えられている」。同論文はこの記述に基づき、苦味の定量指標として苦味アミノ酸であるフェニルアラニンの濃度を用いた。
限界: 引用元(文献23)は原著未確認の孫引き。
データを表示 ingredient-shoyu —has_bitterness_attributed_to→ compound-class-bitter-peptidesclaim: clm-shoyu-bitterness-amino-acids-peptides / type: composition / 更新: 2026-09-01
苦味ペプチド は次を通じて生成する: 多糖(EPS)産生Lactococcus lactis subsp. cremoris株(JFR1)を用いた低脂肪Cheddarチーズの熟成では、HPLC分析で疎水性(苦味に関与するとされる)ペプチドが貯蔵中に有意に増加した。カプセル形成非粘性のStreptococcus thermophilusアジャンクトを用いたチーズ(水分含量・残存レンネット活性が低い)では、この疎水性ペプチドの蓄積はより少なかった。 支持あり
範囲: 低脂肪(reduced-fat) Cheddarチーズ、HPLC分析によるペプチドプロファイルの経時変化。
注記: 論文の結論は『EPS産生培養は脱苦味株と併用すべき』という設計上の示唆であり、本論文自体がその併用を実験検証したわけではない。
EPS産生株JFR1を用いた低脂肪Cheddarチーズでは貯蔵中に疎水性(苦味関連)ペプチドがHPLC分析で有意に増加した。カプセル形成非粘性S. thermophilusアジャンクトのチーズでは蓄積がより少なかった。
限界: 官能パネルによる苦味強度評価は行われておらず、化学分析(HPLC)による疎水性ペプチド量の指標にとどまる。
データを表示 compound-class-bitter-peptides —is_produced_through→ "多糖(EPS)産生Lactococcus lactis subsp. cremoris株(JFR1)を用いた低脂肪Cheddarチーズの熟成では、HPLC分析で疎水性(苦味に関与するとされる)ペプチドが貯蔵中に有意に増加した。カプセル形成非粘性のStreptococcus thermophilusアジャンクトを用いたチーズ(水分含量・残存レンネット活性が低い)では、この疎水性ペプチドの蓄積はより少なかった。"claim: clm-cheddar-eps-culture-bitter-peptide-accumulation / type: composition / 更新: 2026-09-01
感覚(5) 範囲: 熟成ゴーダとエイジドシャープチェダー(水溶性抽出物)
注記: 個別ペプチド単独の説明力は限定的: Broadbent 2002 では単一ペプチド濃度と苦味スコアの相関は r=0.56-0.58 にとどまり、2ペプチド併用指標で r=0.84(limits 参照)。
熟成Goudaの水溶性画分から計16種の苦味ペプチドを同定。いずれもカゼインのタンパク分解由来で、11種は未報告のβ-casein由来(β-CN(57-69)由来6種、β-CN(198-206)由来2種ほか)、6種はαs1-casein由来。
限界: チーズの熟成期間・産地等の試料詳細は抄録に記載なし。
熟成sharp Cheddarの苦味を担う化合物として、最も苦味強度の高い5ペプチド(すべてβ-casein由来)をde novoシーケンスで同定。
限界: 2019年に正誤表あり(内容未確認)。抄録に濃度・閾値の絶対値なし。
限定: 個別ペプチド濃度と苦味スコアの相関は弱く(r=0.56-0.58)、αs1-CN f1-9 と β-CN f193-209 の併用指標で r=0.84。著者は "Although other peptides certainly contribute to bitterness" と、未測定の苦味寄与体の存在を明示。
限界: チーズの苦味を単一ペプチドに帰属させる主張全般への箍。減脂肪モデル系での回帰。
データを表示 ingredient-cheese —derives_bitterness_in_part_from→ compound-class-bitter-peptidesclaim: clm-cheese-bitterness-casein-peptides / type: sensory / 更新: 2026-08-30
苦味ペプチド の認知閾値: 0.05-6.0 mmol/L(合成・精製した12ペプチドが明瞭な苦味)。最低閾値はデカペプチド YPFPGPIHNS の 0.05 mmol/L でカフェイン様の苦味質 支持あり
範囲: 熟成ゴーダチーズから精製・合成したペプチド
注記: 閾値測定法・パネル人数は抄録に記載なし。
精製・合成したペプチドの官能評価で、12種が明瞭な苦味を示し認知閾値は0.05-6.0 mmol/L。デカペプチド YPFPGPIHNS はカフェイン様苦味質で最低の0.05 mmol/L。
限界: パネル人数・閾値測定手順は抄録に記載なし。
文脈: 逐語: 'the synthetic peptides exhibited a bitter taste with threshold values 0.25 and 0.16mM'. 合成された2つの疎水性ペプチドはウシβ-カゼイン f61-67(H-Pro-Phe-Pro-Gly-Pro-Ile-Pro-OH)と f60-66 に対応し、チーズから単離された苦味ペプチドの共通部分として選ばれた。このように独立したグループも、カゼイン由来チーズ苦味ペプチドの閾値をゴーダのセット(0.05-6.0 mmol/L)と同じサブ mM から mM の範囲に位置づけている。
限界: ゴーダのセットとは異なるペプチド(C 末端のゴーダ由来デカペプチドではなくβ-カゼインの中間部)であるため、裏づけるのは桁のオーダーであって個別の値ではない。パネル人数と閾値の手続きは抄録に記載されていない。
限定: 合成ペプチドの味は4名のパネルで判定され、閾値はカフェインを基準物質とした相対比(Rcaf)として報告された。全長ペプチドから短縮するにつれ閾値濃度は単調に上昇した(苦味が弱まる)。 逐語: 「The taste of a synthetic peptide was organoleptically determined by panel evaluation involving four people. The threshold value of bitterness was compared with that of caffeine, which was employed as a standard bitter substance, and the ratio was expressed as 」
限界: パネル規模が小さく、絶対閾値ではない。
データを表示 compound-class-bitter-peptides —has_recognition_thresholds_of→ "0.05-6.0 mmol/L(合成・精製した12ペプチドが明瞭な苦味)。最低閾値はデカペプチド YPFPGPIHNS の 0.05 mmol/L でカフェイン様の苦味質"claim: clm-gouda-peptide-thresholds / type: sensory / 更新: 2026-08-30
範囲: エイジドシャープチェダー 対 ヤングマイルドチェダー。味の再構築実験
注記: 配列は抄録の記載通り(残基番号は抄録にないため書かない)。
熟成中に GPVRGPFPIIV・YQEPVLGPVRGPFPI・MPFPKYPVEP は28.7倍・3.1倍・1.8倍に増加、APHGKEMPFPKYPVEPF はsharpのみで検出、MAPKHKEMPFPKYPVEPF は不変。5ペプチドを等濃度添加したmild Cheddarモデルは本物のsharpと苦味強度に有意差なし。主寄与は GPVRGPFPIIV。
限界: 濃度絶対値・パネル詳細は抄録に記載なし。
熟成チェダーにおいて、MALDI-TOFで定量したβカゼインC末端の苦味ペプチドβ-CN f193-209の濃度は、訓練パネルの苦味強度と相関した: 相関係数は180日で0.803、270日で0.554。すなわち独立したグループが、βカゼインC末端ペプチドをチェダーの苦味と定量的に結びつけており、βカゼイン由来ペプチド(f193-209断片を含む)がシャープチェダーの苦味を再構成した再構成実験の結果と整合する。
限界: 相関にとどまり、追跡されたのは単一ペプチド; 270日で相関が低下することを著者らは他の苦味ペプチドやマスキング化合物に帰しており、それ自体が単一ペプチドへの帰属を制約する。パネルの詳細は抄録にない。
データを表示 compound-class-bitter-peptides —reconstitute_bitterness_of→ ingredient-cheeseclaim: clm-cheddar-bitter-reengineering / type: sensory / 更新: 2026-08-30
苦味ペプチド はタンパク加水分解物の苦味の原因となる: タンパク質の酵素加水分解で頻発する苦味は、主に疎水性アミノ酸からなる低分子量ペプチドの生成による(総説の総括) 支持あり
範囲: 酵素による食品タンパク質加水分解物
注記: 「低分子量ほど苦い」ではない: 1000 Da 未満画分は最も苦味が弱い(Cho 2004, limits 参照)。
"Enzymatic hydrolysis of proteins frequently results in bitter taste, which is due to the formation of low molecular weight peptides composed of mainly hydrophobic amino acids."(verbatim)
限界: 総説抄録であり、分子量範囲や疎水性の定量的境界は示されない。
限定: 苦味は分子量に対し非単調で、約3000-4000 Da(第1加水分解物)・2000 Da(第2)で最大、1000 Da未満に低下すると苦味も低下し、<1000 Da画分は両者で最も苦味が弱い。
限界: 「低分子量ペプチド=苦い」という総括を大豆系で限定する。カゼイン系での分画データではない。
苦味ペプチドはそのほとんどが疎水性アミノ酸を多く含むペプチドであり、構成アミノ酸に基づいて算出される平均疎水性値(Q値)が苦味ペプチドか否かの推定に利用される。Q値が1,400以上であるペプチドは苦味を有すると推定される(ただし分子量6,000Da以下のペプチドに限る)。ペプチドのC末端における疎水性アミノ酸の存在が苦味発現に重要とされる。これまでに、大豆タンパク質のペプシン水解物、カゼインのトリプシン水解物や細菌プロテアーゼ水解物から、苦味ペプチドが分離・同定されている。
限界: Q値ルールは分子量6,000Da以下のペプチドに限定される近似則である。
データを表示 compound-class-bitter-peptides —cause_bitterness_of_protein_hydrolysates→ "タンパク質の酵素加水分解で頻発する苦味は、主に疎水性アミノ酸からなる低分子量ペプチドの生成による(総説の総括)"claim: clm-hydrolysate-bitterness-hydrophobic-peptides / type: sensory / 更新: 2026-08-30
範囲: 清酒のペプチドについては,官能的に良好な寄与をすると報告されている(先行研究の紹介)。
文脈: 清酒のペプチドについては,官能的に良好な寄与をすると報告されており15),最近は生理機能をもつものも注目されている16)。
限界: 引用元(文献15)を直接確認していない。橋爪(2008)自身が単離した苦味ペプチドの評価(強い苦味・不快な後味)とは対象ペプチドが異なる可能性がある。
データを表示 ingredient-sake —has_positive_sensory_attributes→ compound-class-bitter-peptidesclaim: clm-sake-peptides-reported-positive-elsewhere / type: sensory / 更新: 2026-09-01
機構・受容体(5) 範囲: 異種発現細胞カルシウムアッセイ: HEK293(Maehashi 2008)と C6 グリオーマ(Upadhyaya 2010)
注記: 独立2系の細胞アッセイが同一受容体を指す。in vivo での寄与度は未確定。
苦味ジペプチド Gly-Phe・Gly-Leu(25 mM)は hTAS2R1 を最も強く活性化し、他受容体には無応答か弱い応答。"the tasteless dipeptide, Gly-Gly, did not activate any hTAS2Rs."(100 mMまで試験)。"hTAS2R1 was more sensitive to bitter peptides than to other bitter compounds such as denatonium, picrotin, salicin, and caffeine."
限界: 高濃度側では背景シグナルも上昇と著者が明記。細胞系の結果でありヒト官能での受容体寄与は直接示されない。
苦味トリペプチドはジペプチドより強くT2R1を活性化し、最強の Phe-Phe-Phe (FFF) はEC50がマイクロモルオーダー。ホモロジーモデリングでは苦味ペプチドは受容体細胞外面の同一結合ポケット(TM1/2/3/7とECL1/2のキャップ構造)に結合。
限界: EC50の実数値は抄録に記載なし。モデリングは実験構造ではない。
「TAS2R1 exhibited strong responses to the two bitter peptides GL and GF but not to the nonbitter GG」「The receptor that was found to be activated by the highest number of peptides is the receptor TAS2R1」との記述。Table 1(List of Amino Acids/Peptides Activating Human Bitter Taste Receptors)のTAS2R1行に「F, GF, GL, IF, LW, FI, FL, WW, GLL, IQW, LKP, FFF, WWW, YPFPGPIHNS, LVYPFPGPIHN」が列記される。
限界: 既存文献(Maehashi 2008・Upadhyaya 2010を含む)由来データの統合を含んでおり、本論文独自の新規実験データとの切り分けはこの検討での抽出範囲では完全には確認できていない。
データを表示 compound-class-bitter-peptides —activates→ receptor-tas2r1claim: clm-bitter-peptides-activate-tas2r1 / type: mechanism / 更新: 2026-08-30
範囲: HEK293 異種発現、カルシウムイメージング
注記: 画分は多数のペプチド混合物であり、個々のペプチドと受容体の対応はこの実験だけでは特定できない(limits 参照)。
カゼイン(1%)のトリプシン12時間消化物をゲル濾過した苦味画分M(2.5 mg/mL、"tastes moderately bitter (equivalent to the bitterness of 0.125 mM of quinine)")に、hTAS2R1・hTAS2R4・hTAS2R14・hTAS2R16発現細胞が応答し、特にhTAS2R1とhTAS2R4が強く応答。
限界: 画分は混合物であり応答の帰属は画分単位。
限定: 苦味画分は構造の異なる多数のペプチドを含み、非苦味ペプチドも含む可能性が高いと著者が明記。また高濃度ペプチドでは背景シグナルが上昇し、hTAS2R16は合成ジペプチドには有意応答を示さなかった(特異的リガンドのサリシンには応答)。
限界: 個々のペプチドと個々のhTAS2Rの対応づけはこの実験系では確定できない。
データを表示 compound-class-bitter-peptides —activates_multiple_members_of→ receptor-tas2r-familyclaim: clm-casein-digest-multi-tas2rs / type: mechanism / 更新: 2026-08-30
苦味ペプチド は次を通じて生成する: PrtP陽性のLactococcus lactis株によるカゼイン分解。タンパク質・カルシウム濃度が高い培地条件下でPrtPペプチダーゼ活性が上昇し、カゼイン由来苦味ペプチド濃度の上昇を伴った。ただしprtP遺伝子の転写量自体は高濃度カルシウム(+50 mM CaCl2)条件でむしろ50%超低下しており、活性の変化と転写量の変化は必ずしも一致しなかった(株により活性は+50 mMで15%低下する場合とやや上昇する場合の両方が観察された)。 支持あり
範囲: カゼイン再構成培地(タンパク質3.4%・8.5% w/v)、L. lactis LTH 7122・LTH 7123株を用いた発酵実験。
注記: 低濃度カルシウム(+5 mM)ではprtP転写・活性ともに上昇したが、高濃度(+50 mM)では転写と活性の応答が乖離する非線形な関係として報告されている。
高タンパク・高カルシウム条件でPrtPペプチダーゼ活性が上昇し、カゼイン由来苦味ペプチド濃度の上昇を伴った。+50 mM CaCl2ではprtP転写量は50%超低下する一方、ペプチダーゼ活性は株により15%低下(LTH 7123)または上昇(LTH 7122)と異なる挙動を示した。
限界: 転写量とペプチダーゼ活性の関係は株間で一貫しない非線形な関係として報告されている。
データを表示 compound-class-bitter-peptides —is_produced_through→ "PrtP陽性のLactococcus lactis株によるカゼイン分解。タンパク質・カルシウム濃度が高い培地条件下でPrtPペプチダーゼ活性が上昇し、カゼイン由来苦味ペプチド濃度の上昇を伴った。ただしprtP遺伝子の転写量自体は高濃度カルシウム(+50 mM CaCl2)条件でむしろ50%超低下しており、活性の変化と転写量の変化は必ずしも一致しなかった(株により活性は+50 mMで15%低下する場合とやや上昇する場合の両方が観察された)。"claim: clm-cheese-prtp-activity-calcium-protein / type: mechanism / 更新: 2026-09-01
範囲: 層: 細胞(総説が要約する一次研究の記述)。
注記: 総説(Jalševac et al. 2022)がチーズ熟成ペプチドに関する一次研究(文献42)を要約した記述の孫引き。一次資料は未読。 総説の該当箇所は受容体の活性化だけを述べ、ペプチド自体を「苦い」とは書いていない。
"Finally, larger peptides found in the cheese-maturation process also activated TAS2R39 as well as TAS2R1."
限界: 一次資料(文献42)は原著未読の孫引き。ペプチドの具体的な配列・濃度は総説に記載なし。
データを表示 compound-class-bitter-peptides —activates→ receptor-tas2r1claim: clm-w71g1-tas2r1-cheese-peptides / type: mechanism / 更新: 2026-09-07
範囲: 層: 細胞(総説が要約する一次研究の記述)。
注記: 総説(Jalševac et al. 2022)がアミノ酸・ペプチドに関する一次研究(文献40-42)を要約した記述の孫引き。一次資料は未読。 総説の該当箇所は受容体の活性化だけを述べ、これらのペプチド自体を「苦い」とは書いていない。
"TAS2R39 was activated by Trp-Trp and Leu-Trp dipeptides but not by other Trp-containing combinations (like Trp-Leu)...Of the tested tripeptides, Trp-Trp-Trp and Leu-Leu-Leu both activated TAS2R39...larger peptides found in the cheese-maturation process also activated TAS2R39 as well as TAS2R1."
限界: 一次資料(文献40-42)は原著未読の孫引き。活性化の強度・濃度は総説に記載なし。
データを表示 compound-class-bitter-peptides —activates→ receptor-tas2r39claim: clm-w71g1-tas2r39-bitter-peptides / type: mechanism / 更新: 2026-09-07
加工・調理でどう変わる(3) 苦味ペプチド は次の方法で脱苦味できる: 牛乳タンパク加水分解物(チーズフレーバー原料)は、Pro・Leu・Phe・Val残基を特異的に切断するプロテアーゼ(複数種の中でFUが最適)による高度な加水分解(加水分解度7.5%→28.0%)によって苦味官能スコアが5.0から0.3-2.7まで(使用プロテアーゼにより変動)低下した。混合物全体の苦味は個々のペプチドの苦味の単純合算では予測できず、分子量0.5-3 kDa・残基数5-23のペプチドの存在量、次いでN末端塩基性アミノ酸・C末端疎水性アミノ酸の寄与が大きいと分析された。 支持あり
範囲: 牛乳タンパク(カゼイン系)加水分解物によるチーズフレーバー(酵素加水分解物)。官能評価とペプチドミクス(構造解析)を併用。
注記: 対象は熟成チーズそのものではなく、酵素で加水分解した「チーズフレーバー」原料である点に注意。
加水分解度が7.5%から28.0%へ増すにつれ苦味官能スコアは5.0から0.3-2.7へ低下(使用プロテアーゼに依存、FUが最適)。Pro・Leu・Phe・Valを切断するプロテアーゼが効果的な脱苦味に望ましいと分析された。
限界: 全体の苦味は個々のペプチドの苦味の単純合算では予測できないと報告されている。
データを表示 compound-class-bitter-peptides —can_be_debittered_by→ "牛乳タンパク加水分解物(チーズフレーバー原料)は、Pro・Leu・Phe・Val残基を特異的に切断するプロテアーゼ(複数種の中でFUが最適)による高度な加水分解(加水分解度7.5%→28.0%)によって苦味官能スコアが5.0から0.3-2.7まで(使用プロテアーゼにより変動)低下した。混合物全体の苦味は個々のペプチドの苦味の単純合算では予測できず、分子量0.5-3 kDa・残基数5-23のペプチドの存在量、次いでN末端塩基性アミノ酸・C末端疎水性アミノ酸の寄与が大きいと分析された。"claim: clm-cheese-flavoring-protease-debittering / type: processing / 更新: 2026-09-01
苦味ペプチド は微生物由来アミノペプチダーゼ。エンドペプチダーゼによるタンパク質加水分解でペプチド末端に露出した疎水性アミノ酸をN末端側から選択的に切り出すことで苦味を低減するとされる。商用アミノペプチダーゼは主に、タンパク加水分解物の脱苦味、タンパク質の深度加水分解、調味料・チーズ・生理活性ペプチドの製造に利用されると総説される。 によって低減される支持あり
範囲: 微生物アミノペプチダーゼの性質・用途に関する総説。
微生物アミノペプチダーゼはN末端から疎水性アミノ酸を選択的に切り出し、タンパク加水分解物・チーズ等の苦味を低減する用途で応用されると総説される。
限界: 個別の菌株・酵素ごとの効果の定量比較はこの抄録には無い。
データを表示 compound-class-bitter-peptides —is_reduced_by→ "微生物由来アミノペプチダーゼ。エンドペプチダーゼによるタンパク質加水分解でペプチド末端に露出した疎水性アミノ酸をN末端側から選択的に切り出すことで苦味を低減するとされる。商用アミノペプチダーゼは主に、タンパク加水分解物の脱苦味、タンパク質の深度加水分解、調味料・チーズ・生理活性ペプチドの製造に利用されると総説される。"claim: clm-bitter-peptides-reduced-by-aminopeptidases / type: processing / 更新: 2026-09-01
苦味ペプチド は次を通じて生成する: チーズの苦味は熟成中に進行するタンパク質分解(プロテオリシス)の必然的な帰結として生じるとされ、プロテオリシス活性と苦味ペプチド蓄積との関係が総説として整理されている。 支持あり
範囲: チーズ苦味に関する総説(1996年)。苦味ペプチドの単離・検出法、物理化学的性質、制御法を扱う。
苦味はプロテオリシス(タンパク質分解)の必然的な帰結であるとし、プロテオリシス活性と苦味ペプチド蓄積の関係、単離・検出法、物理化学的性質を総説する。
限界: 1996年の総説であり、その後の分子生物学的知見(例: PrtP特異性)は反映されていない。
データを表示 compound-class-bitter-peptides —is_produced_through→ "チーズの苦味は熟成中に進行するタンパク質分解(プロテオリシス)の必然的な帰結として生じるとされ、プロテオリシス活性と苦味ペプチド蓄積との関係が総説として整理されている。"claim: clm-cheese-bitterness-proteolysis-review / type: processing / 更新: 2026-09-01
↑ このページの上へ ・ ← 図鑑(化合物群)へ戻る