English

受容体

TAS2R39

TAS2R39は、ガレート型茶カテキンおよび多くの(イソ)フラボノイドで活性化されるヒト苦味受容体サブタイプ。

模式図 — 写真ではなく、根拠をもとに苦味研究所が組んだ説明図
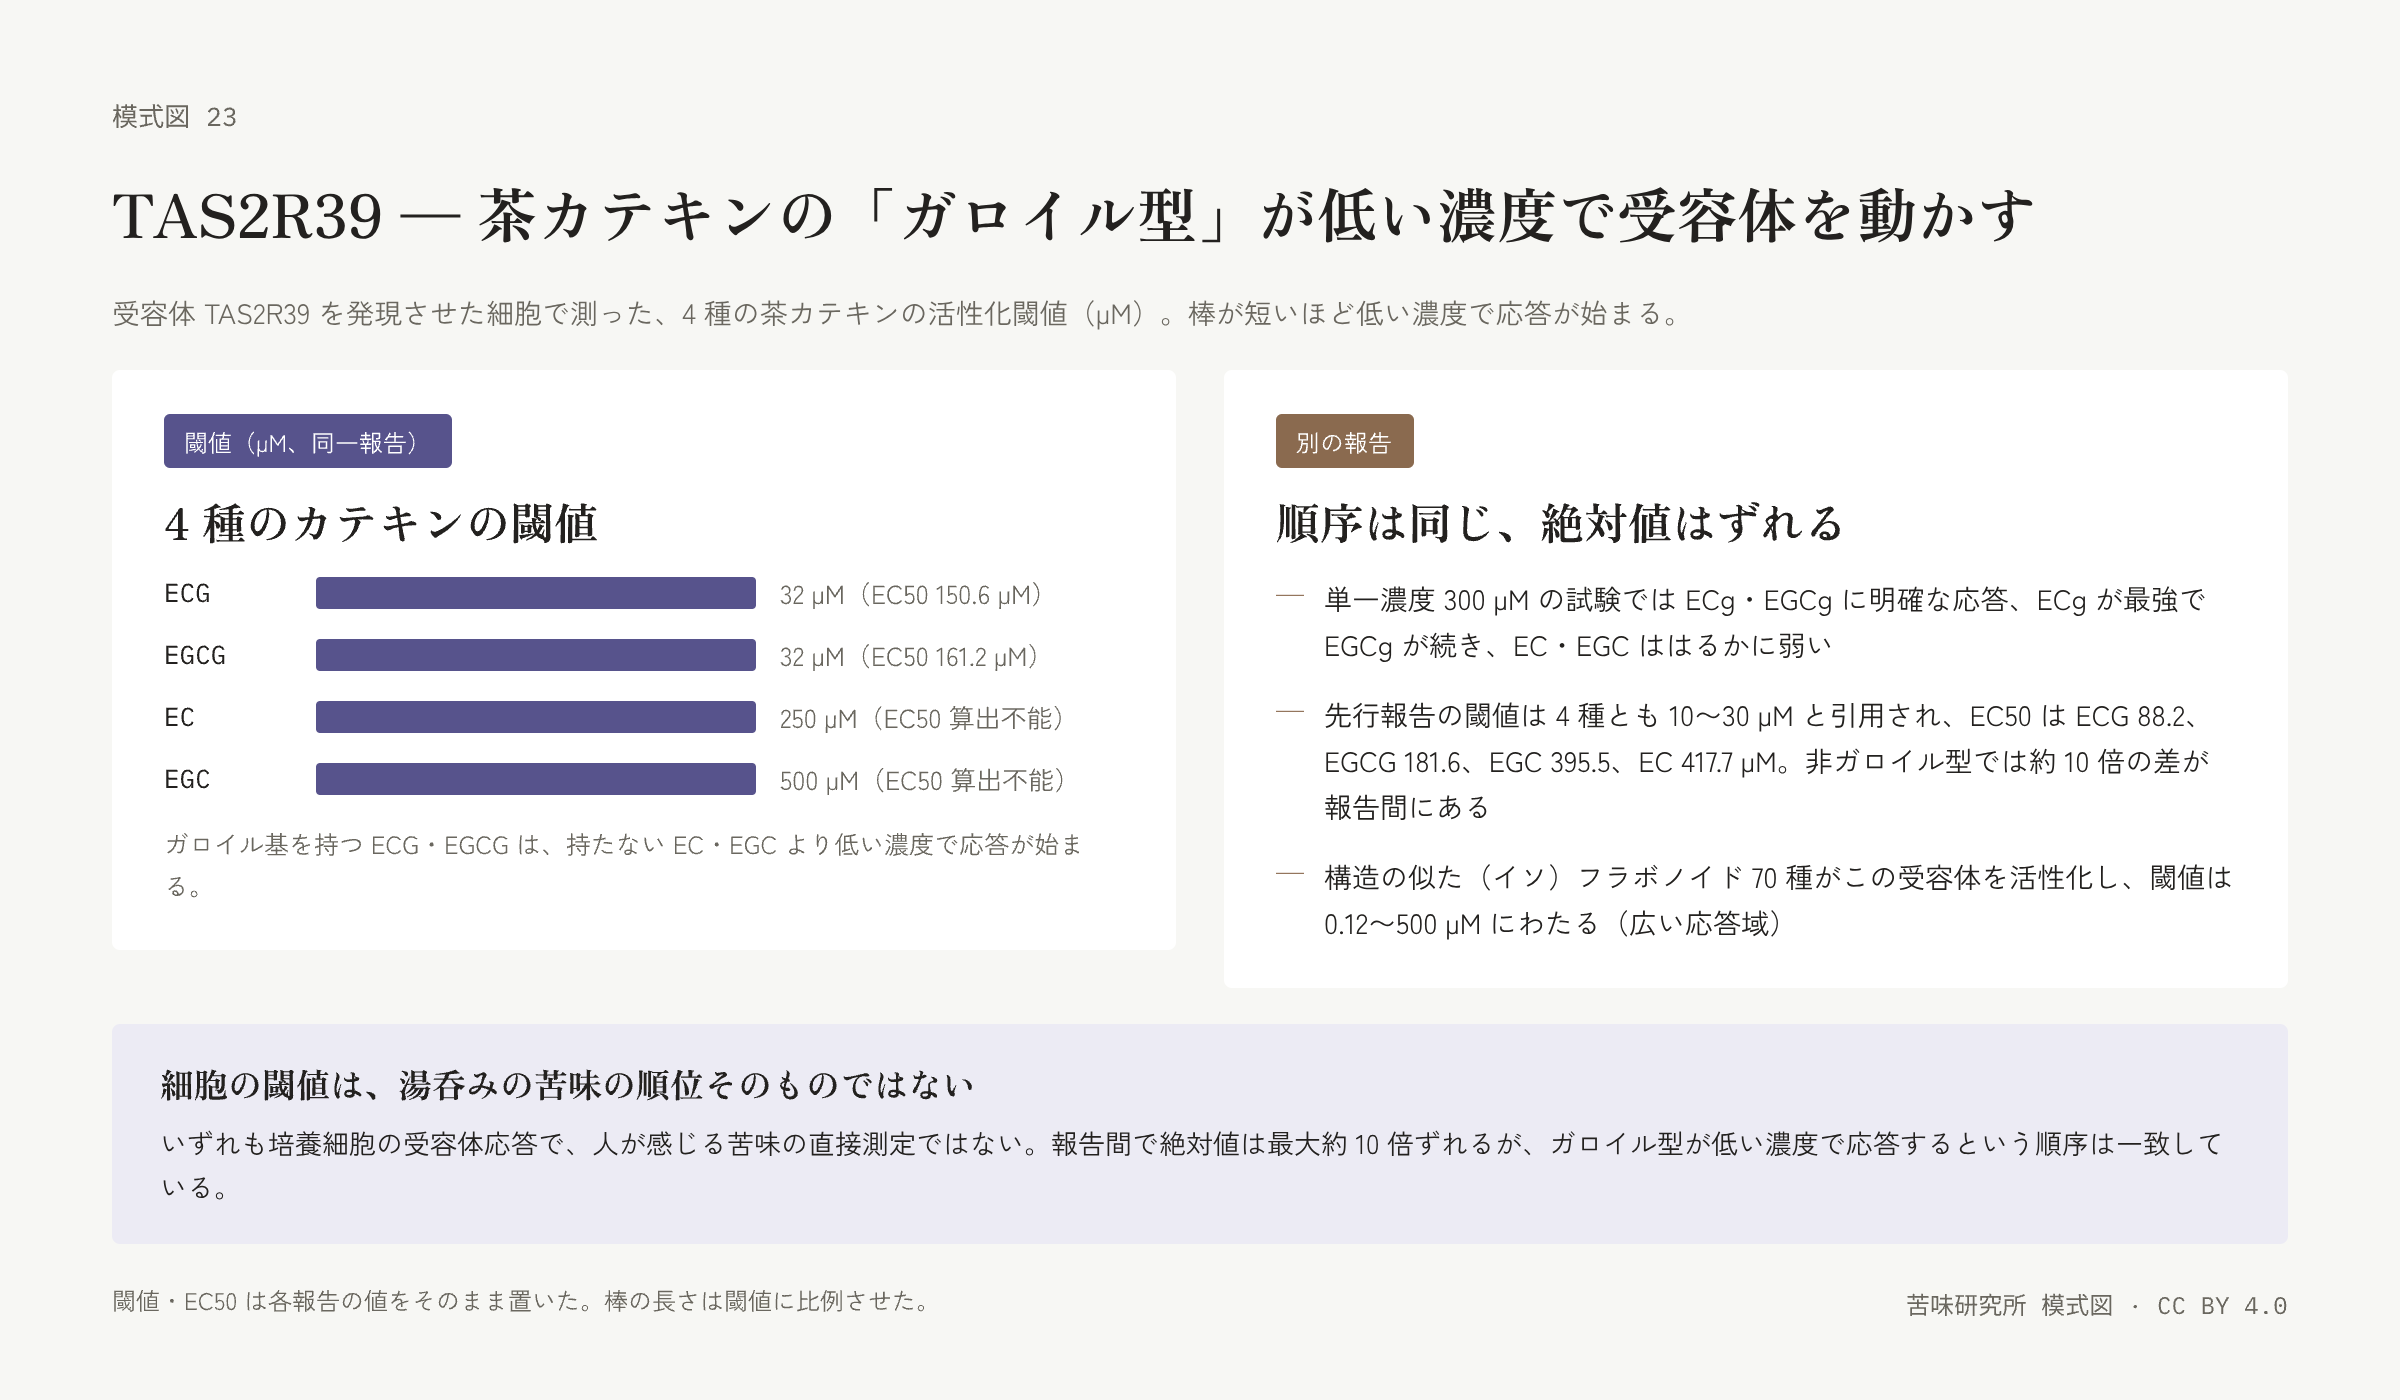
左の札は四本の横棒。上から ECG、EGCG、EC、EGC で、ガロイル型の二本が短く、EC と EGC の棒が長い。それぞれの右に閾値と EC50 の値。右の札は別の報告の三行(単一濃度の試験、先行報告の閾値と EC50、七十種のフラボノイドの応答域)。下に「細胞の閾値は湯呑みの苦味の順位そのものではない」の帯。

根拠の数値を図にしたもの(苦味研究所作成)· CC BY 4.0

TAS2R39 — 茶カテキンの「ガロイル型」が低い濃度で受容体を動かす

TAS2R39 を発現させた細胞で測った 4 種の茶カテキンの活性化閾値(ECG 32、EGCG 32、EC 250、EGC 500 µM)を棒の長さで比べ、EC50(ECG 150.6、EGCG 161.2 µM)と別の報告の値(単一濃度 300 µM の試験、先行報告の 10〜30 µM)を添えた図。ガロイル基を持つ ECG・EGCG が低い濃度で応答するという順序は報告間で一致し、絶対値は最大約 10 倍ずれる。

根拠: ev-w35-tas2r39-catechins-roland · ev-w35-narukawa-roland-context · ev-tas2r39-catechins-assay · ev-tas2r39-broad-tuning-context · ev-catechin-tas2r39-soares2013

説明を読む ↓

受容体 / receptor-tas2r39

このページの内容(6 節)
  1. 説明
  2. この説明の根拠(4)
  3. 主題ハブ
  4. 関連をたどる
  5. 関連項目(10)
  6. 機構・受容体(3)
↑

苦味を読む

TAS2R39は、ガレート型茶カテキンや多くの(イソ)フラボノイドで活性化されるヒト苦味受容体サブタイプである。hTAS2R39発現培養細胞を用いた細胞ベースアッセイでは、エピカテキンガレート(ECg)・エピガロカテキンガレート(EGCg)のいずれも300マイクロモルで明確な応答を示し、ECgへの応答が試験したカテキンの中で最も強く、EGCgがそれに続いた。一方、非ガロイル化のエピカテキン(EC)・エピガロカテキン(EGC)への応答ははるかに弱かった。

構造的に類似した(イソ)フラボノイドの大規模セット(68から70種)を用いた別の研究では、そのうち70種がhTAS2R39を活性化し、活性化閾値は0.12から500マイクロモルの範囲にわたって、この受容体が幅広いチューニングを持つことを示した。同じ研究グループが茶カテキン4種について独立に再試験した結果では、閾値はECGとEGCGで32マイクロモル、ECで250マイクロモル、EGCで500マイクロモルと定量されている。ガロイル化カテキン(ECG・EGCG)の閾値が非ガロイル化カテキン(EC・EGC)より低い、すなわちより強く活性化するという順序は、先行研究の知見と揃っている。ただし先行研究が報告した閾値(4種いずれも10から30マイクロモルの範囲)と比べると、この独立再試験は非ガロイル化カテキンでおよそ10倍高い閾値を報告しており、アッセイ間で絶対値には差がある。

別の独立した細胞アッセイでは、(-)-エピカテキンがTAS2R4・TAS2R5・TAS2R39の3受容体を活性化することが確認されており、カテキン骨格を持つ化合物がTAS2R39の作動薬であるという知見が、異なる研究グループの実験系からも裏づけられている。

総説は、ジペプチドのうちTrp-TrpとLeu-TrpがTAS2R39を活性化し、Trp-Leuなど他のTrpを含む組み合わせでは活性化が見られなかったと記す。トリペプチドではTrp-Trp-TrpとLeu-Leu-Leuの両方がTAS2R39を活性化したとも記す。チーズの熟成過程で生じるより大きなペプチドについても、TAS2R39を活性化すると総説は述べる。

同じ総説は、大豆のイソフラボン類にもTAS2R39のアゴニストがあることを挙げ、アグリコンであるゲニステインがTAS2R39とTAS2R14の両方を活性化する一方、配糖体側にはTAS2R39に特異的に作用するものがあると記す。TAS2R39の基質の幅が、ペプチドからイソフラボン配糖体まで及ぶことを示す記述である。

この説明の根拠

  1. Evaluation of the bitterness of green tea catechins by a cell-based assay with the human bitter taste receptor hTAS2R39

    Narukawa M; Noga C; Ueno Y; Sato T; Misaka T; Watanabe T / 2011 / 学術論文 / 抄録確認

    この本文で確認した範囲: 300マイクロモルでのガレート型カテキンの応答強度序列の根拠に使用

  2. Bitter taste receptor activation by flavonoids and isoflavonoids: modeled structural requirements for activation of hTAS2R14 and hTAS2R39

    Roland WS; van Buren L; Gruppen H; Driesse M; Gouka RJ; Smit G; Vincken JP / 2013 / 学術論文 / 全文確認

    この本文で確認した範囲: 70種を活性化する幅広いチューニングという背景記述の根拠に使用/独立再試験で定量された4種カテキンの閾値数値の根拠に使用/先行研究とおよそ10倍差があるという文献間比較の根拠に使用

  3. Different phenolic compounds activate distinct human bitter taste receptors

    Soares S; Kohl S; Thalmann S; Mateus N; Meyerhof W; De Freitas V / 2013 / 学術論文 / 抄録確認

    この本文で確認した範囲: 別研究室での独立したエピカテキン活性化確認の根拠に使用

  4. The Hidden One: What We Know About Bitter Taste Receptor 39

    Jalševac F; Terra X; Rodríguez-Gallego E; Beltran-Debón R; Blay MT; Pinent M; Ardévol A / 2022 / レビュー論文 / 全文確認

    この本文で確認した範囲: Trp-Trp等のジ・トリペプチドとチーズ熟成ペプチドの活性化/大豆イソフラボン配糖体4種の特異的アゴニスト同定

関連をたどる

茶カテキン類 →活性化する→ TAS2R39

苦味ペプチド →活性化する→ TAS2R39

大豆イソフラボン配糖体 →活性化する→ TAS2R39

構造化された主張 — 節を開くと、主張ごとの確度・根拠・限界が読めます

機構・受容体(3)

茶カテキン類はTAS2R39を活性化する支持あり

範囲: 培養細胞アッセイ。300 uM の ECg・EGCg に明確な応答。ECg が最強で EGCg が続き、EC・EGC は遥かに弱い

注記: 抄録では単一濃度(300 uM)のみ報告。受容体のチューニングは広い(多くのフラボノイドも TAS2R39 を活性化する)。

hTAS2R39 発現細胞は ECg・EGCg いずれの 300 uM にも明確な応答を示した。ECg への応答が試験カテキン中最強で EGCg が続き、EC・EGC への応答ははるかに弱かった。
限界: 報告濃度は単一(300 uM)。in vitro の受容体応答であり、苦味の直接測定ではない。
出典: Evaluation of the bitterness of green tea catechins by a cell-based assay with the human bitter taste receptor hTAS2R39(Narukawa M; Noga C; Ueno Y; Sato T; Misaka T; Watanabe T, 2011)・抄録確認
文脈: 構造的に類似した(イソ)フラボノイドの大規模セットのうち70種が hTAS2R39 を活性化し、活性化閾値は 0.12-500 uM にわたり、受容体の広いチューニングを示した。抄録は個々の茶カテキンの名を挙げていない。
限界: カテキン固有の値は抄録レベルでは見えない。チューニングの文脈情報としてのみ用いる。
出典: Bitter taste receptor activation by flavonoids and isoflavonoids: modeled structural requirements for activation of hTAS2R14 and hTAS2R39(Roland WS; van Buren L; Gruppen H; Driesse M; Gouka RJ; Smit G; Vincken JP, 2013)・抄録確認
ポルト大学+DIfE の独立アッセイで、(-)-epicatechin が TAS2R4・TAS2R5・TAS2R39 の3受容体を活性化。カテキン骨格化合物が TAS2R39 の作動薬であることを Narukawa 2011(静岡)・Roland 2013(Wageningen)と別系統のラボから追認。
限界: 抄録のみ確認。試験されたのは非没食子型の EC で、ECg・EGCg 自体の再測定ではない。EC50 は化合物間で100倍変動と記載されるが EC の値は抄録に無い。
出典: Different phenolic compounds activate distinct human bitter taste receptors(Soares S; Kohl S; Thalmann S; Mateus N; Meyerhof W; De Freitas V, 2013)・抄録確認
文脈: Narukawa 2011の一次全文は未取得だが、同じ受容体(hTAS2R39)を独立に再試験したRoland 2013(別ソース)の全文Discussionがナルカワの値を直接引用: "Previously reported thresholds were between 10 and 30 µM for all four catechins (14)" 及び EC50として ECG 88.2 µM, EGCG 181.6 µM, EGC 395.5 µM, EC 417.7 µM。Roland自身の値(閾値 ECG/EGCG 32 µM, EC 250 µM, EGC 500 µM; EC50 ECG 150.6 µM, EGCG 161.2 µM)と比較し、非ガロイル化カテキン(EC・EGC)で約10倍高い閾値を報告し、アッセイ間差を明記している。
限界: この行はsrc-narukawa-2011-tas2r39-catechinsではなくsrc-roland-2013-flavonoid-tas2rの全文からの二次引用。Narukawa自体のevidence行への是正材料ではなく、別ソースからの補強コンテキストとして扱う。
出典: Bitter taste receptor activation by flavonoids and isoflavonoids: modeled structural requirements for activation of hTAS2R14 and hTAS2R39(Roland WS; van Buren L; Gruppen H; Driesse M; Gouka RJ; Smit G; Vincken JP, 2013)・全文確認
Narukawa 2011(300 µM単一濃度)とは独立の異種発現受容体アッセイで、hTAS2R39 に対する4種カテキンの用量反応閾値・EC50を定量。逐語: "we identified thresholds of ECG, EGCG, EC, and EGC, to be 32, 32, 250, and 500 µM, respectively"。EC50 は ECG 150.6 µM, EGCG 161.2 µM(EC・EGCは算出不能)。ガロイル化カテキン(ECG・EGCG)の閾値が非ガロイル化カテキン(EC・EGC)より低い(=より強い活性化)という順序はNarukawaと整合。
限界: 受容体アッセイ値であり、ヒト官能の直接測定ではない。Narukawaと比べ非ガロイル化カテキンで約10倍高い閾値を報告しており、アッセイ間で絶対値に差がある(傾向は同じ)。
出典: Bitter taste receptor activation by flavonoids and isoflavonoids: modeled structural requirements for activation of hTAS2R14 and hTAS2R39(Roland WS; van Buren L; Gruppen H; Driesse M; Gouka RJ; Smit G; Vincken JP, 2013)・全文確認
データを表示compound-catechins —activate→ receptor-tas2r39
claim: clm-galloylated-catechins-activate-tas2r39 / type: mechanism / 更新: 2026-08-30
苦味ペプチドはTAS2R39を活性化する予備的

範囲: 層: 細胞(総説が要約する一次研究の記述)。

注記: 総説(Jalševac et al. 2022)がアミノ酸・ペプチドに関する一次研究(文献40-42)を要約した記述の孫引き。一次資料は未読。 総説の該当箇所は受容体の活性化だけを述べ、これらのペプチド自体を「苦い」とは書いていない。

"TAS2R39 was activated by Trp-Trp and Leu-Trp dipeptides but not by other Trp-containing combinations (like Trp-Leu)...Of the tested tripeptides, Trp-Trp-Trp and Leu-Leu-Leu both activated TAS2R39...larger peptides found in the cheese-maturation process also activated TAS2R39 as well as TAS2R1."
限界: 一次資料(文献40-42)は原著未読の孫引き。活性化の強度・濃度は総説に記載なし。
出典: The Hidden One: What We Know About Bitter Taste Receptor 39(Jalševac F; Terra X; Rodríguez-Gallego E; Beltran-Debón R; Blay MT; Pinent M; Ardévol A, 2022)・全文確認
データを表示compound-class-bitter-peptides —activates→ receptor-tas2r39
claim: clm-w71g1-tas2r39-bitter-peptides / type: mechanism / 更新: 2026-09-07
大豆イソフラボン配糖体はTAS2R39を活性化する予備的

範囲: 層: 細胞(総説が要約する一次研究の記述)。

注記: 総説(Jalševac et al. 2022)が大豆イソフラボンに関する一次研究(文献25)を要約した記述の孫引き。一次資料は未読。

"Genistein, a predominant isoflavone in soybeans, activated both TAS2R39 and TAS2R14...Further experiments with similar isoflavones were conducted and 15 other TAS2R39 agonists were discovered, with acetylgenistin, genistin, glycitin and malonyl genistin being specific to TAS2R39."
限界: 一次資料(文献25)は原著未読の孫引き。EC50等の濃度は総説に記載なし。
出典: The Hidden One: What We Know About Bitter Taste Receptor 39(Jalševac F; Terra X; Rodríguez-Gallego E; Beltran-Debón R; Blay MT; Pinent M; Ardévol A, 2022)・全文確認
データを表示compound-class-soy-isoflavone-glycosides —activates→ receptor-tas2r39
claim: clm-w71g1-tas2r39-soy-isoflavone-glycosides / type: mechanism / 更新: 2026-09-07

↑ このページの上へ ・ ← 図鑑(受容体)へ戻る