English

受容体

TAS2R31

TAS2R31は、12番染色体上の高い連鎖不平衡クラスターにコードされる5メンバーの TAS2R30-46 サブファミリーに属するヒト苦味受容体(旧称 TAS2R44)。サッカリン・アセスルファムK・キニーネに応答する。

模式図 — 写真ではなく、根拠をもとに苦味研究所が組んだ説明図
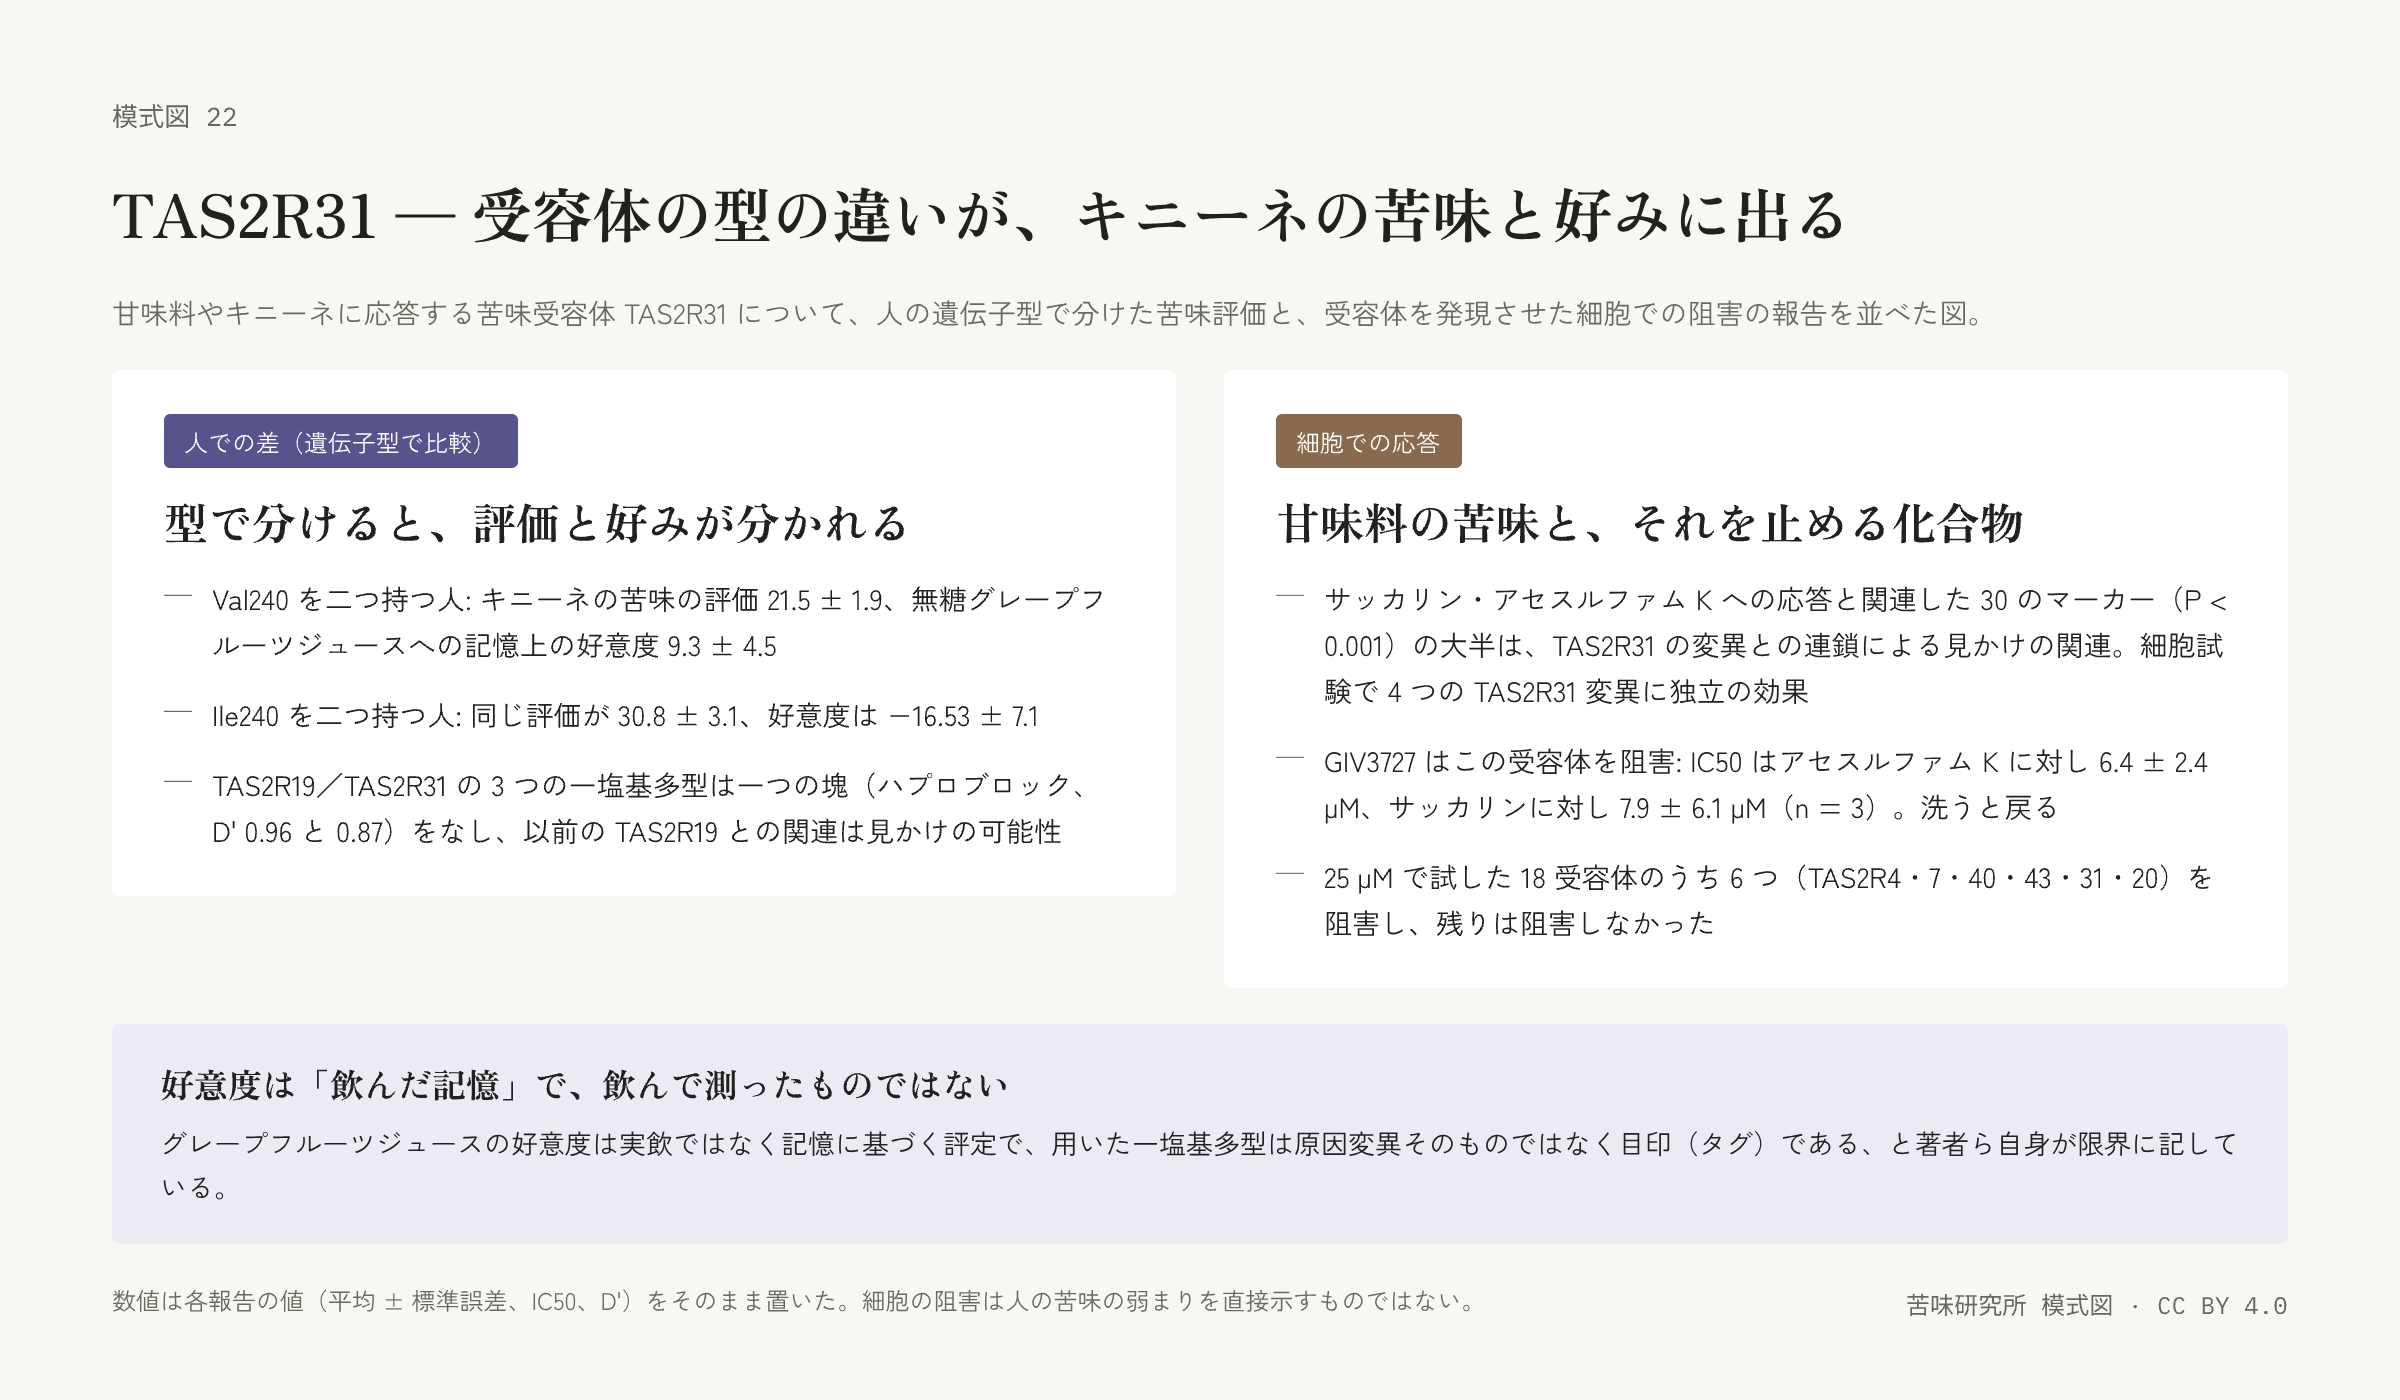
左右二枚の札。左は「人での差」の札で、Val240 と Ile240 をそれぞれ二つ持つ人のキニーネ評価と好意度の値、三つの一塩基多型が一つの塊をなすことの三行。右は「細胞での応答」の札で、甘味料への応答と TAS2R31 の変異、GIV3727 の IC50、阻害した受容体の数の三行。下に「好意度は飲んだ記憶で測ったもの」の帯。

模式図(苦味研究所作成)· CC BY 4.0

TAS2R31 — 受容体の型の違いが、キニーネの苦味と好みに出る

TAS2R31 の遺伝子型で分けた成人のキニーネの苦味評価と無糖グレープフルーツジュースへの記憶上の好意度、サッカリン・アセスルファム K への応答との関連が TAS2R31 の変異との連鎖で説明されること、拮抗薬 GIV3727 の細胞での阻害を並べた図。好意度は実飲ではなく記憶に基づく評定である。

根拠: ev-grapefruit-tas2r31-hayes · ev-roudnitzky-ld-grapefruit-context · ev-roudnitzky-tas2r31 · ev-slack-giv3727-invitro

説明を読む ↓

受容体 / receptor-tas2r31

このページの内容(7 節)
  1. 説明
  2. この説明の根拠(3)
  3. 主題ハブ
  4. 関連をたどる
  5. 関連項目(10)
  6. 感覚(1)
  7. 機構・受容体(2)
↑

苦味を読む

TAS2R31は、かつてTAS2R44と呼ばれていたヒトの苦味受容体で、12番染色体上に集まる5つの受容体からなるTAS2R30-46サブファミリーの一つであり、サッカリンやアセスルファムK、キニーネに応答するとされる。この遺伝子にあるVal240Ileという変異は、キニーネの苦味の感じ方とグレープフルーツジュースの好ましさの両方に関わっているらしい。成人246名を対象にした研究では、Val240のホモ接合体(同じ型の遺伝子を両親から一つずつ受け継いだ人)はキニーネの苦味を低く評価し(21.5)、Ile240のホモ接合体はより高く評価した(30.8)。同時に、無糖グレープフルーツジュースを思い出して評価した好ましさも、Val240ホモ接合体で高かった(9.3対-16.53)。著者らは、以前TAS2R19との関連として報告されていたものが、実はTAS2R31との強い連鎖不平衡(近くの遺伝子が一緒に受け継がれやすい状態)を反映していた可能性を論じている。ただしグレープフルーツの好ましさは、実際に飲んだ評価ではなく記憶に基づく点には注意が要る。

サッカリンとアセスルファムKへの苦い後味の感じ方も、TAS2R31の変異と結びつけられている。TAS2R30-46クラスター全体の遺伝子配列を調べた研究では、当初30個の指標がこれら甘味料への応答と関連していたが、この領域は連鎖不平衡が強く、詳しく調べるとその大半はTAS2R31の変異との連鎖から生じた見かけ上の関連だったという。実際にTAS2R31には、受容体の応答に独立した効果を持つ4つのミスセンス変異(アミノ酸を変える変異)が確認されている。

この受容体の働きを調べる道具としては、GIV3727という化合物が知られており、hTAS2R31を発現させた細胞でアセスルファムKに対しIC50 6.4マイクロモル、サッカリンに対し7.9マイクロモルで応答を阻害する。ただし試験した18種のヒト苦味受容体のうち、TAS2R31を含む6種を阻害しており、TAS2R31だけに選択的に効く物質ではない。

この説明の根拠

  1. Quinine Bitterness and Grapefruit Liking Associate with Allelic Variants in TAS2R31

    Hayes JE; Feeney EL; Nolden AA; McGeary JE / 2015 / 学術論文 / 全文確認

    この本文で確認した範囲: Val240Ile変異別のキニーネ苦味評点とグレープフルーツ好意度の数値を確認した

  2. Genomic, genetic and functional dissection of bitter taste responses to artificial sweeteners

    Roudnitzky N; Bufe B; Thalmann S; Kuhn C; Gunn HC; Xing C; Crider BP; Behrens M; Meyerhof W; Wooding SP / 2011 / 学術論文 / 抄録確認

    この本文で確認した範囲: TAS2R19関連が連鎖不平衡の産物である可能性の機構的背景を確認した/30指標の関連が連鎖不平衡でTAS2R31変異に集約される結果を確認した

  3. Modulation of bitter taste perception by a small molecule hTAS2R antagonist

    Slack JP; Brockhoff A; Batram C; Menzel S; Sonnabend C; Born S; Galindo MM; Kohl S; Thalmann S; Ostopovici-Halip L; Simons CT; Ungureanu I; Duineveld K; Bologa CG; Behrens M; Furrer S; Oprea TI; Meyerhof W / 2010 / 学術論文 / 全文確認

    この本文で確認した範囲: GIV3727のTAS2R31を含む6受容体阻害とIC50値を確認した

関連をたどる

グレープフルーツジュース →嗜好と関連→ TAS2R31

TAS2R31 →の苦味の個人差を媒介する→ サッカリン

GIV3727 →拮抗阻害する→ TAS2R31

構造化された主張 — 節を開くと、主張ごとの確度・根拠・限界が読めます

感覚(1)

グレープフルーツジュースの嗜好と関連: TAS2R31支持あり

範囲: 成人246名(大半が欧州系)。無糖グレープフルーツジュースの想起嗜好を双極性快不快スケールで評定

注記: キニーネ苦味に並行する関連が見られた(21.5 対 30.8 gLMS)。著者らは、過去の TAS2R19 の関連は TAS2R31 との連鎖不平衡の反映である可能性を論じる。TAS2R31 の検証済みアゴニストはキニーネであり、ナリンギンでもリモニンでもない。

Val240 ホモ接合体はキニーネの苦味を低く評価し(21.5 plus-minus 1.9。Ile240 ホモ接合体は 30.8 plus-minus 3.1)、グレープフルーツジュースへの記憶上の好意度は高かった(9.3 plus-minus 4.5 対 -16.53 plus-minus 7.1)。TAS2R19/TAS2R31 の3つの SNP はハプロブロックを形成しており(D' 0.96 および 0.87)、以前の TAS2R19 の関連は LD のアーチファクトである可能性がある。
限界: グレープフルーツの好意度は実飲でなく記憶に基づく。SNP は推定原因変異 Arg35Trp ではなくタグ SNP であり、未測定変異との LD の可能性がある(著者ら自身の限界記述)。
出典: Quinine Bitterness and Grapefruit Liking Associate with Allelic Variants in TAS2R31(Hayes JE; Feeney EL; Nolden AA; McGeary JE, 2015)・全文確認
文脈: 機能的に異なる TAS2R 遺伝子座にまたがる高い LD の存在は、多くの化合物への苦味応答が異なる遺伝子に媒介される場合でも強く相関することを予測する。ハプロタイプ解析は、TAS2R30-46 クラスターの単一マーカー関連の大半が TAS2R31 との LD の見かけ上の産物であることを示した。
限界: 以前の TAS2R19 とグレープフルーツ/キニーネの関連は TAS2R31 の LD アーチファクトかもしれないという Hayes 2015 の議論に機構的背景を与えるものであり、この研究自体がグレープフルーツの好意度を検証しているわけではない。
出典: Genomic, genetic and functional dissection of bitter taste responses to artificial sweeteners(Roudnitzky N; Bufe B; Thalmann S; Kuhn C; Gunn HC; Xing C; Crider BP; Behrens M; Meyerhof W; Wooding SP, 2011)・抄録確認
データを表示ingredient-grapefruit-juice —has_liking_associated_with→ receptor-tas2r31
claim: clm-grapefruit-liking-tas2r31 / type: sensory / 更新: 2026-08-30

機構・受容体(2)

TAS2R31はサッカリンの苦味の個人差を媒介する支持あり

範囲: 白人被験者60名における TAS2R30-46 の全遺伝子シークエンシング、両甘味料への味応答、受容体アレルの in vitro アッセイ。当初 P < 0.001 で関連したマーカーは30個

TAS2R30-46 の5遺伝子すべてにおける非同義変異を含む30のマーカーがサッカリンとアセスルファム K への応答と関連した(P < 0.001)が、この領域の連鎖不平衡は高く(D prime および r2 > 0.95)、ハプロタイプ解析により関連の大半は TAS2R31 の変異との LD から生じた見かけ上のものであることが明らかになった。in vitro アッセイは、受容体応答に独立した効果を持つ4つの TAS2R31 変異の機能的重要性を確認した。
限界: 抄録レベル: TAS2R31 の4変異の同定と効果量は未取得の全文にある。単一祖先集団のサンプル。
出典: Genomic, genetic and functional dissection of bitter taste responses to artificial sweeteners(Roudnitzky N; Bufe B; Thalmann S; Kuhn C; Gunn HC; Xing C; Crider BP; Behrens M; Meyerhof W; Wooding SP, 2011)・抄録確認
データを表示receptor-tas2r31 —mediates_variation_in_bitterness_of→ compound-saccharin
claim: clm-tas2r31-saccharin-bitterness / type: mechanism / 更新: 2026-08-30
GIV3727はTAS2R31を拮抗阻害する支持あり

範囲: キメラ G タンパク質 G16gust44 とともに単一の hTAS2R を安定または一過性に発現する HEK293 細胞のカルシウムイメージング。パネルスクリーニングでは 25 uM でアンタゴニストを試験

注記: 17,854 化合物のスクリーニングから同定され、候補アンタゴニスト139個が得られた。著者らはオルソステリックかつ克服不能型のアンタゴニストである可能性が高いと結論する: 25 uM の GIV3727 はアゴニストの EC50 を3〜10倍シフトさせ、最大シグナル振幅を35〜70%低下させた。

hTAS2R31に対する17,854化合物のハイスループットカルシウムイメージングスクリーニングで候補拮抗薬139件が得られ、うちGIV3727はアセスルファムKに対しIC50 6.4 +/- 2.4 uM、サッカリンに対し7.9 +/- 6.1 uM(n = 3)を示した。阻害は洗浄により可逆的であった。既知の作動薬をもつ25種のhTAS2Rのうち18種に対して25 uMで試験したところ、GIV3727は6受容体(hTAS2R4、7、40、43、31、20)を有意に阻害し、残りは阻害しなかった。変異導入により、7.39位の塩基性残基(Lys265)がhTAS2R46骨格における鍵となる接触点であることが示された。
限界: 4受容体(hTAS2R3/5/7/13)では正確なEC90作動薬濃度を確立できず、代わりにアーティファクトを生じない最大作動薬濃度を用いたため、真のEC90でのhTAS2R7阻害は不確実である。7.39位のリジンは感受性の十分条件ではなく、hTAS2R50も同残基をもつが非感受性である。
出典: Modulation of bitter taste perception by a small molecule hTAS2R antagonist(Slack JP; Brockhoff A; Batram C; Menzel S; Sonnabend C; Born S; Galindo MM; Kohl S; Thalmann S; Ostopovici-Halip L; Simons CT; Ungureanu I; Duineveld K; Bologa CG; Behrens M; Furrer S; Oprea TI; Meyerhof W, 2010)・全文確認
データを表示compound-giv3727 —antagonizes→ receptor-tas2r31
claim: clm-giv3727-tas2r-antagonism / type: mechanism / 更新: 2026-08-30

↑ このページの上へ ・ ← 図鑑(受容体)へ戻る